阿豹正在努力修編本節,製作更好的教材,未來內容可能稍有變更。
長鏈脂肪酸如何進入粒線體:Carnitine shuttle
β-氧化主要在粒線體基質進行。長鏈脂肪酸通常先在粒線體外膜胞質側活化成 fatty acyl-CoA,但 fatty acyl-CoA 無法直接穿過粒線體內膜,必須使用 carnitine shuttle:
- 粒線體外膜胞質側:fatty acid + CoA → fatty acyl-CoA。Acyl-CoA synthetase 將 ATP 轉成 AMP + PPi;PPi 隨即水解。
- 粒線體外膜:CPT-I(carnitine palmitoyltransferase I)把 acyl 基團由 CoA 轉給 carnitine,形成 acylcarnitine;原本的 CoA 留在膜外。
- 粒線體內膜:carnitine-acylcarnitine translocase(CACT)將 acylcarnitine 送入基質,同時把游離 carnitine 送出。
- 內膜基質側:CPT-II把 acyl 基團由 acylcarnitine 轉回基質內的 CoA,重新形成 fatty acyl-CoA;carnitine 返回循環使用。
中、短鏈脂肪酸通常可不經 carnitine shuttle 進入粒線體,再於基質內活化。中鏈三酸甘油酯可繞過長鏈脂肪酸運輸缺陷的原理即在此,但臨床是否適用仍須依實際酵素缺陷決定。
| 缺陷 | 主要受影響組織與典型表現 |
| CPT1A deficiency | 以肝臟表現為主;禁食或感染時出現低酮性低血糖、肝腫大或肝性腦病。骨骼肌症狀通常不突出 |
| CPT II deficiency | 常見成人肌病型;長時間運動、禁食、感染或受寒後反覆肌痛、CK 升高、橫紋肌溶解與肌紅蛋白尿。嚴重嬰兒型則可有低酮性低血糖與心肌病 |
| Primary carnitine deficiency | 可有低酮性低血糖、骨骼肌無力、CK 升高與擴張型心肌病 |
Malonyl-CoA 抑制 CPT-I。進食後脂肪酸合成活躍、malonyl-CoA 升高時,長鏈脂肪酸進入粒線體的入口被關閉,避免合成與分解形成無效循環。
β-氧化的 4 步循環
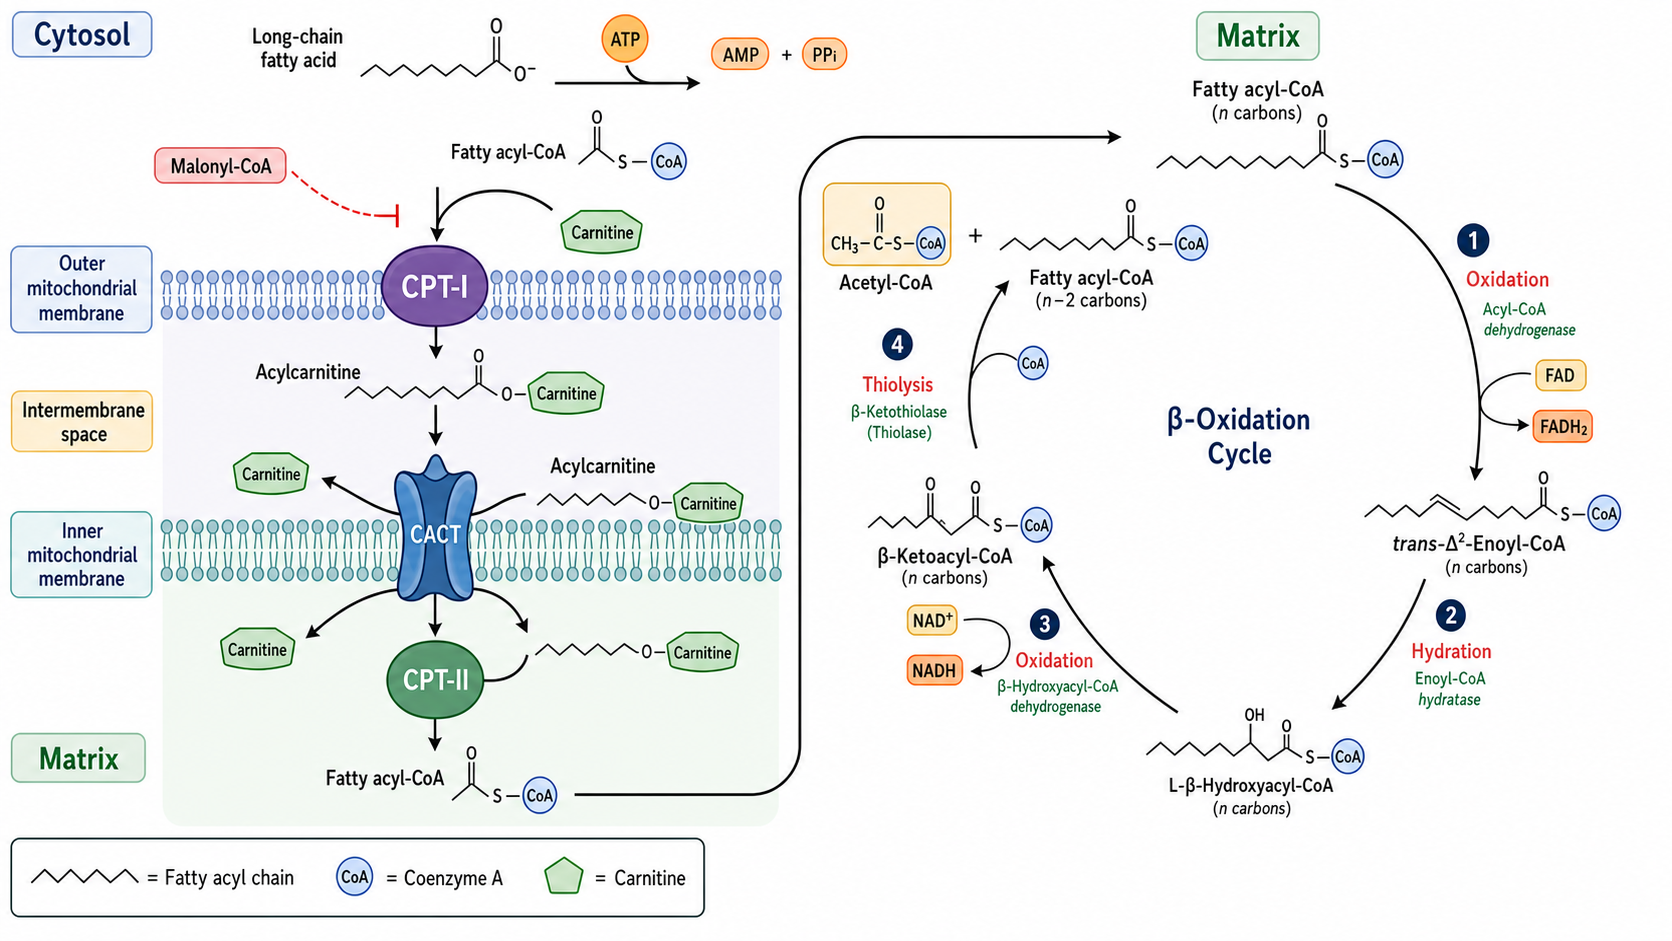
圖:AI 輔助重繪。概念依據:GeneReviews:CPT1A Deficiency* 與 Fatty Acid Oxidation。*
| 步驟 | 反應 | 酵素 | 主要產物 |
| 1 | 氧化,在 α、β 碳之間形成 trans 雙鍵 | Acyl-CoA dehydrogenase | trans-Δ²-enoyl-CoA、FADH₂;電子再交給 ETF |
| 2 | 水合,雙鍵加水 | Enoyl-CoA hydratase | L-β-hydroxyacyl-CoA |
| 3 | 氧化,β-hydroxyl 變成 β-keto | β-Hydroxyacyl-CoA dehydrogenase | β-ketoacyl-CoA、NADH |
| 4 | 硫解,CoA 切斷 α、β 碳之間的鍵 | β-Ketothiolase | Acetyl-CoA 與縮短 2 個碳的 acyl-CoA |
一般每輪產生 1 FADH₂、1 NADH 與 1 acetyl-CoA,脂肪酸鏈縮短 2 個碳;最後一輪把 4 碳 acyl-CoA 切成 2 個 acetyl-CoA。因此,含 個碳的偶數碳飽和脂肪酸要進行 輪,總共形成 個 acetyl-CoA。
例:palmitate(16:0)的完整 ATP 算式
- 共進行 7 輪,不是 8 輪。
- β-氧化階段形成 7 FADH₂、7 NADH 與 8 acetyl-CoA。
- 每個 acetyl-CoA 經檸檬酸循環形成 3 NADH、1 FADH₂ 與 1 GTP,相當於約 10 ATP。
採 NADH = 2.5 ATP、FADH₂ = 1.5 ATP 的現代 P/O 估值:
活化代價為何是 2 ATP equivalents? Acyl-CoA synthetase 將 ATP 轉成 AMP + PPi,PPi 再水解成 2 Pi,等於消耗兩個高能磷酸酐鍵。
若題目明定沿用 NADH = 3 ATP、FADH₂ = 2 ATP 的舊 P/O 換算,同一帳目會得到 129 ATP;未給條件時應優先使用現代估值 106 ATP。
不飽和脂肪酸的額外步驟
β-氧化的 enoyl-CoA hydratase 只接受 trans-Δ² 雙鍵,因此天然 cis 雙鍵必須先改造成可進入標準循環的中間物。
- 單元不飽和脂肪酸:oleate(18:1 Δ9)經 3 輪 β-氧化後形成 cis-Δ³-dodecenoyl-CoA,再由 enoyl-CoA isomerase轉成 trans-Δ² 中間物。此處跳過一次 acyl-CoA dehydrogenase 反應,因此少形成 1 FADH₂。
- 多元不飽和脂肪酸:linoleate(18:2 Δ9,12)除需要 enoyl-CoA isomerase,還會形成 2,4-dienoyl-CoA,必須由 2,4-dienoyl-CoA reductase消耗 NADPH 後才能繼續 β-氧化。
題目陷阱:oleate 與 palmitoleate 等單元不飽和脂肪酸需要 isomerase;linoleate 等含特定偶數位置雙鍵的多元不飽和脂肪酸還需要 2,4-dienoyl-CoA reductase。Laurate 是飽和脂肪酸,不需要這兩種輔助酵素。
奇數碳脂肪酸
奇數碳脂肪酸最後一輪除 acetyl-CoA 外,還留下 propionyl-CoA(3C)。Propionyl-CoA 也可來自 valine、isoleucine、methionine、threonine 與膽固醇側鏈代謝。
Propionyl-CoA carboxylase 需要生物素(biotin, B7);methylmalonyl-CoA mutase 需要 adenosylcobalamin,也就是維生素 B12 的輔酶型。B12 缺乏時 methylmalonic acid 升高,是重要的功能性缺乏指標。B12 神經病變涉及髓鞘與一碳代謝等多重機轉,不宜只歸因於 methylmalonic acid 的直接神經毒性。
β-氧化的調控
- 脂肪酸供應:禁食時低胰島素與兒茶酚胺訊號促進脂肪組織脂解。PKA 磷酸化 perilipin 與 hormone-sensitive lipase(HSL),並經 CGI-58 活化 adipose triglyceride lipase(ATGL);ATGL 負責 TG 水解的第一步,HSL 主要水解 DAG。
- 粒線體入口:肝細胞在升糖素與 AMPK 訊號下抑制 ACC,使 malonyl-CoA 降低,解除對 CPT-I 的抑制。
- 產物回饋:NADH 升高抑制 β-hydroxyacyl-CoA dehydrogenase;acetyl-CoA 升高抑制 thiolase,反映能量與還原當量已充足。
- NADPH:不是飽和脂肪酸 β-氧化核心四步的產物或受質;例外是多元不飽和脂肪酸的 2,4-dienoyl-CoA reductase 會消耗 NADPH。
- 114-2-醫學一 Q91 關於血糖高低與脂質氧化代謝的調控機制,何者正確?…
- 109-2-醫學一 Q91 Carnitine palmitoyl transferases(CPTs)的損…
- 108-2-醫學一 Q89 奇數碳的脂肪酸經過 β-oxidation 後,最後產生的三碳產物會以何種形式直…