阿豹正在努力修編本節,製作更好的教材,未來內容可能稍有變更。
關鍵差別:合成與分解
| 脂肪酸合成 | β-氧化 | |
| 位置 | 胞質 | 粒線體基質 |
| 醯基載體 | ACP(醯基載體蛋白) | CoA |
| 還原當量 | 消耗 NADPH | 形成 FADH₂ 與 NADH |
| 2C 來源 | Malonyl-CoA;縮合時釋出先前加入的 CO₂ | Acetyl-CoA 逐次被切下 |
| 酵素組織 | 哺乳類 FAS-I 同源二聚體多功能酵素 | 4 種反應活性依序作用,並非 FAS 的簡單逆反應 |
| 主要限速/入口控制 | Acetyl-CoA carboxylase 1(ACC1) | CPT-I控制長鏈脂肪酸進入粒線體 |
| 主要產物 | Palmitate(16:0) | Acetyl-CoA |
Acetyl-CoA 從粒線體運出:Citrate shuttle
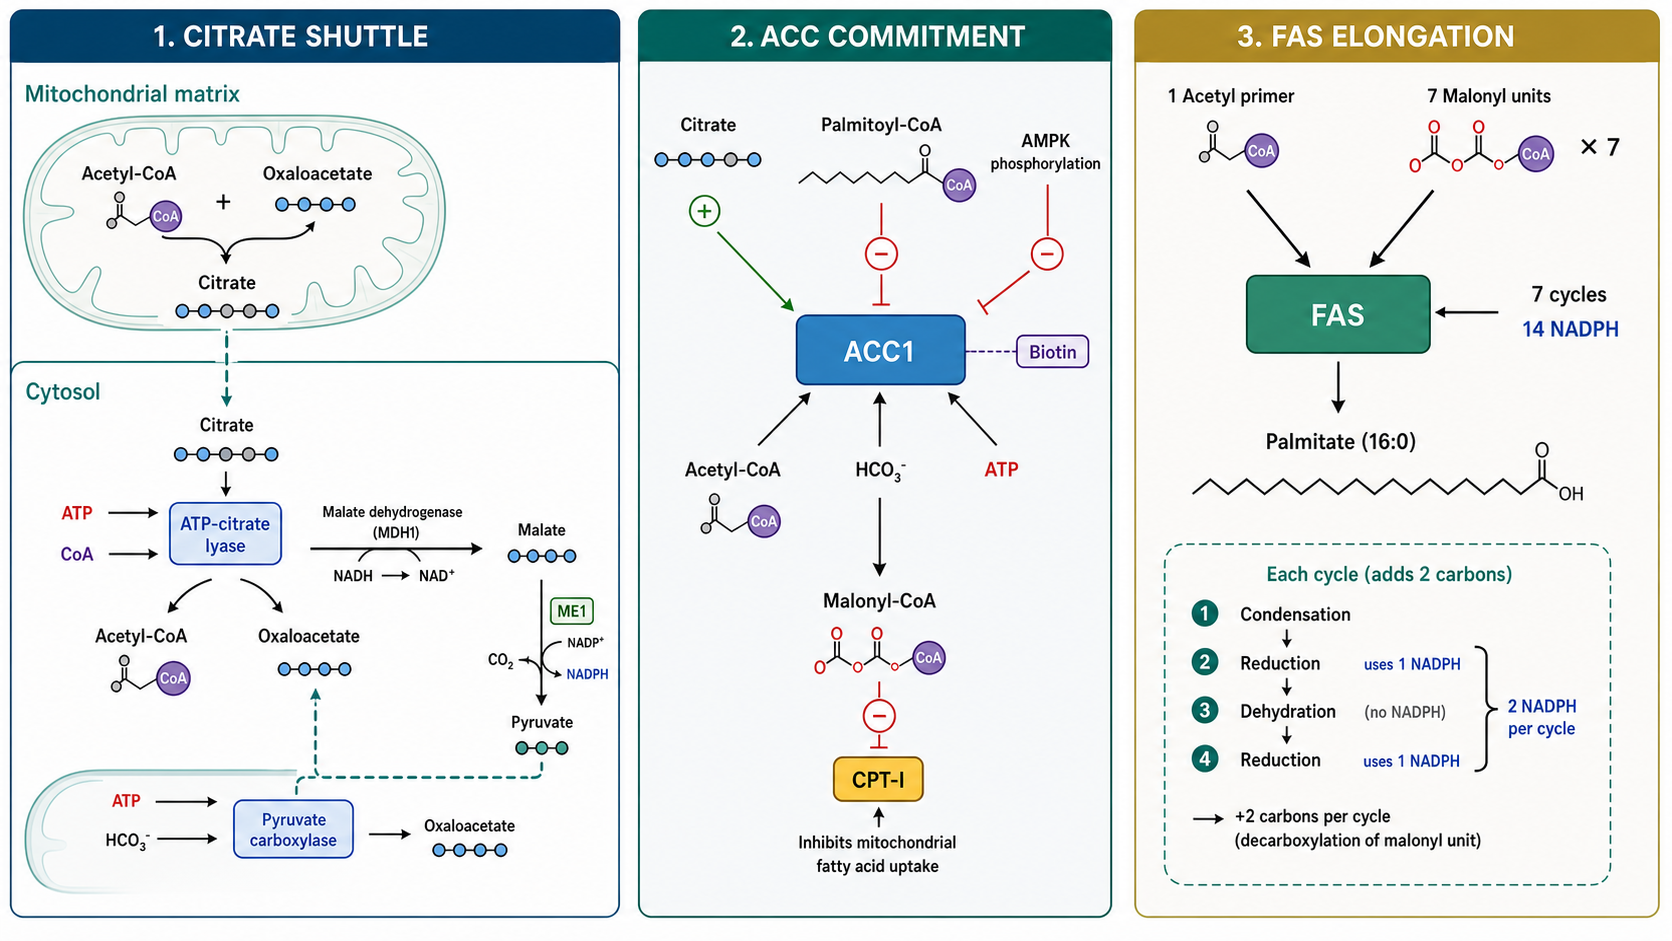
胞質要合成脂肪酸,但葡萄糖氧化形成的 acetyl-CoA 位於粒線體基質,無法直接穿過內膜。細胞以 citrate 搬運其碳骨架:
- 粒線體基質:oxaloacetate(OAA)+ acetyl-CoA → citrate。
- Citrate 經粒線體 citrate carrier(SLC25A1)運到胞質。
- 胞質:ATP-citrate lyase 消耗 ATP 與 CoA,把 citrate 切成 acetyl-CoA + OAA。
- 胞質 OAA 由 malate dehydrogenase 消耗 NADH 還原成 malate。Malate 可返回粒線體,或由 cytosolic malic enzyme(ME1)轉成 pyruvate,同時形成 NADPH與 CO₂。
- Pyruvate 返回粒線體後,可由 pyruvate carboxylase 消耗 ATP 與 HCO₃⁻重新形成 OAA。
這條穿梭把 acetyl-CoA 的碳送到胞質。若 malate 經 ME1 轉成 pyruvate,還可提供部分脂肪酸合成所需的 NADPH;其餘 NADPH 主要可由磷酸戊糖途徑提供。
ACC 的角色
Acetyl-CoA carboxylase(ACC)催化:
此反應的重點如下:
- ACC 是生物素依賴性酵素;biotin 暫時攜帶由 bicarbonate 提供的羧基。
- 反應消耗 ATP,不是 NADH。
- ACC1提供脂肪酸合成所需的胞質 malonyl-CoA,是 de novo lipogenesis 的經典限速步驟。
- ACC2主要位於粒線體外膜附近;其局部形成的 malonyl-CoA 抑制 CPT-I,調節長鏈脂肪酸氧化。
- Malonyl-CoA 在 FAS 縮合時每次貢獻 2 個碳;先前由 ACC 加入的羧基隨即以 CO₂ 釋出。
容易混淆:ACC1 與 ACC2 催化相同反應,但產物所在位置與主要用途不同。ACC1 偏向供應脂肪酸合成;ACC2 偏向經 malonyl-CoA 控制 CPT-I。
ACC 的調控
別位調節:
- Citrate 活化 ACC,並促進酵素形成較具活性的聚合狀態,表示胞質碳源與能量充足。
- 長鏈 fatty acyl-CoA,例如 palmitoyl-CoA,回饋抑制 ACC。
激素與磷酸化:
- 胰島素促進 ACC 去磷酸化與活化,並在較長時間尺度增加 ACC 與 FAS 的表現。
- 升糖素與腎上腺素在經典肝代謝模型中促進 ACC 磷酸化,降低脂肪酸合成。
- AMPK在細胞能量不足時磷酸化並抑制 ACC,使 ATP 優先供應產能反應。
FAS 的 7 輪延長
哺乳類 fatty acid synthase(FAS-I)是由兩條大型多功能 polypeptide 組成的同源二聚體。每條 polypeptide 含 6 個催化功能區與 1 個 ACP 載體區;ACP 以可移動的 phosphopantetheine 臂把合成中的脂肪醯鏈送到各活性區。
起始與每輪延長如下:
- 載入起始基:MAT 先把 acetyl 基團轉到 ACP,再轉到 β-ketoacyl synthase(KS)的 cysteine;malonyl 基團則載入 ACP。
- 縮合:KS 上的 acetyl 或成長中 acyl 基團與 malonyl-ACP 縮合,釋出 CO₂,形成 β-ketoacyl-ACP。
- 第一次還原:β-ketoacyl-ACP reductase 消耗 1 NADPH,形成 β-hydroxyacyl-ACP。
- 脫水:dehydratase 移除 H₂O,形成 trans-enoyl-ACP。
- 第二次還原:enoyl reductase 再消耗 1 NADPH,形成飽和 acyl-ACP。
完成一輪後,成長中的 acyl 基團轉回 KS,ACP 再載入新的 malonyl 基團。每輪消耗 2 NADPH並使碳鏈延長 2 個碳。進行 7 輪後,thioesterase 切下 palmitate(16:0)。
每輪縮合釋出的 CO₂,就是 ACC 製造 malonyl-CoA 時先加入的羧基。這個「先羧化、再脫羧」的設計使縮合反應容易向前進行,但被釋出的碳不會進入脂肪酸主鏈。
合成 palmitate 的帳
- 起始的 1 個 acetyl-CoA 提供 palmitate 甲基端的 2 個碳。
- 7 個 malonyl-CoA 各提供 2 個碳,共加入 14 個碳。
- 總碳數為 。
- 製造 7 個 malonyl-CoA 需要 7 ATP。
- 7 輪延長各需要 2 NADPH,共 14 NADPH。
由胞質 acetyl-CoA 開始計算的總反應為:
帳目邊界:此總反應假設 acetyl-CoA 已位於胞質,不包含 citrate shuttle、pyruvate carboxylase 或產生 NADPH 所需的額外能量。
每合成 1 個 palmitate,需要 14 NADPH 與 7 ATP。
本節對應國考題 共 7 題 · 隨選 3 題
現場作答這 3 題
- 109-2-醫學一 Q92 關於 acetyl-CoA carboxylase 在脂肪生成(lipogene…
- 112-2-醫學一 Q90 Acetyl-CoA carboxylase 為脂肪酸生合成的第一個酵素,其活性…
- 114-1-醫學一 Q91 下列何者可促進脂質合成速限步驟(rate-limiting step)酵素 ac…