阿豹正在努力修編本節,製作更好的教材,未來內容可能稍有變更。
肌紅蛋白(myoglobin, Mb)與血紅素(hemoglobin, Hb)
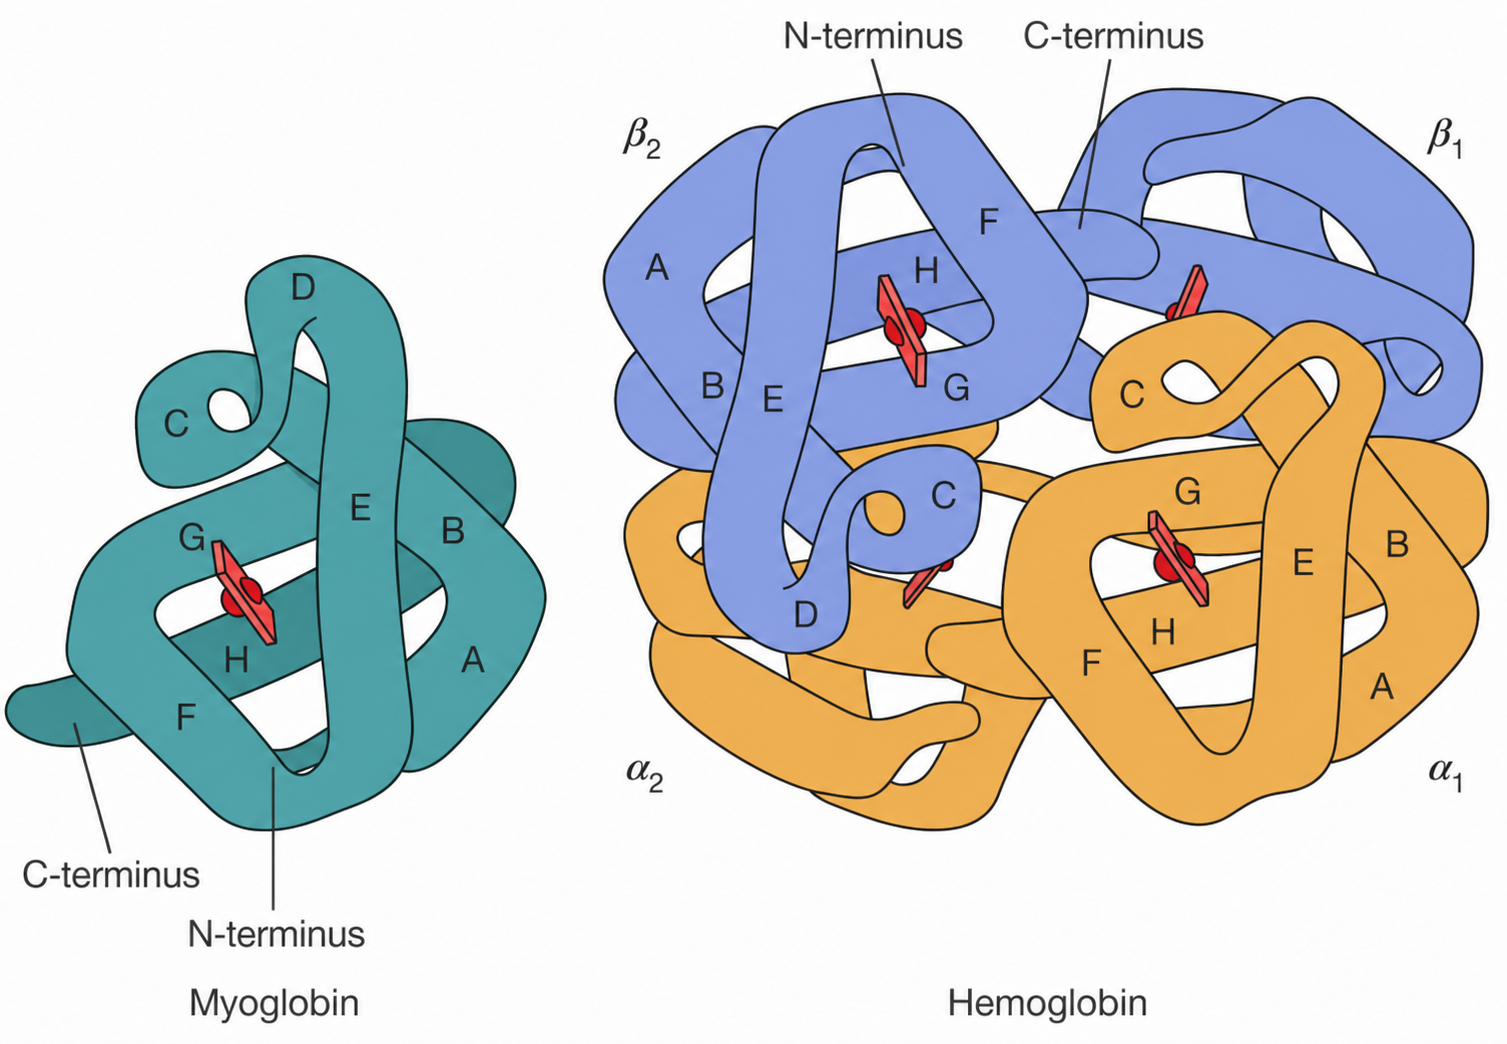
左:肌紅蛋白,一個 Heme/右:血紅素四聚體(α₂β₂)結構,每個次單元含一個 heme。
| 項目 | 肌紅蛋白 | 血紅素 |
|---|---|---|
| 結構 | 單條多肽鏈 + 1 個 heme | α₂β₂ 四聚體、4 個 heme |
| 功能 | 肌肉裡儲存氧 | 紅血球裡運輸氧 |
| 氧親和力曲線 | 雙曲線、親和力高 | S 型(sigmoidal) 協同效應 |
| 別位調節 | 無 | 有(T/R state) |
Heme:氧氣的停車位
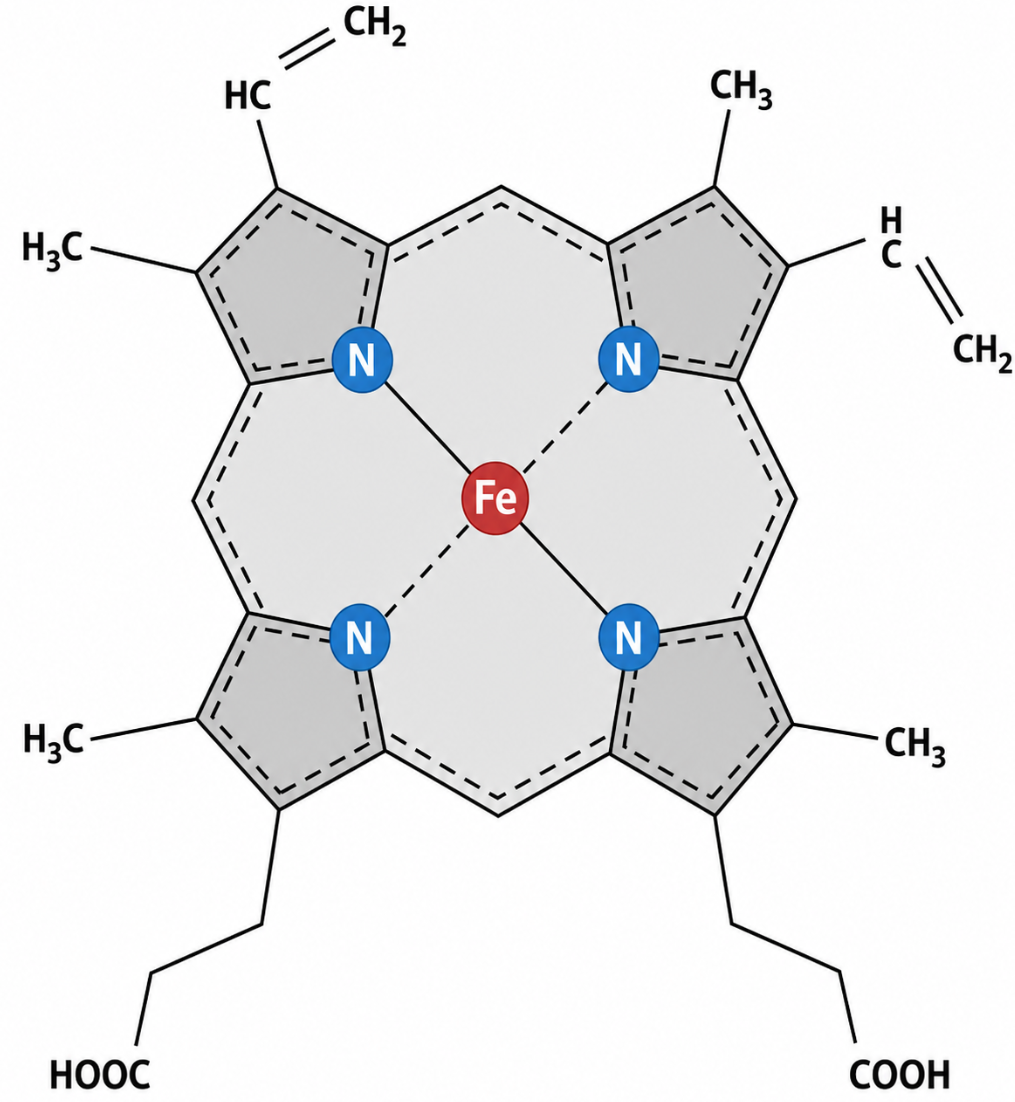
Heme B:一個卟啉環(4 個吡咯環)中央配位一個亞鐵離子(Fe²⁺)。
卟啉(Porphyrin)又稱紫質,是由四個吡咯(Pyrrole)聚合而成的含氮雜環,含有四個向內的氮原子,其可以與金屬元素配位,形成金屬錯合物。
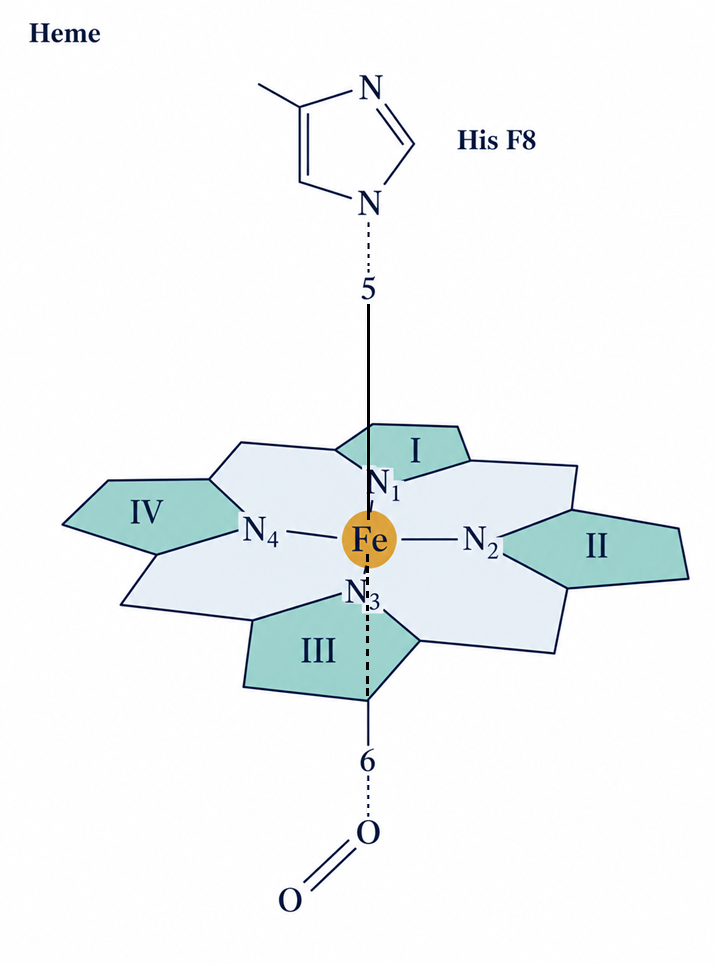
Heme 是一個含鐵的卟啉環(porphyrin ring)。中央的 Fe²⁺ 有 6 個配位位置:
- 4 個配給卟啉環的 4 個 N
- 1 個配給蛋白質上的 proximal histidine(F8 位置):這把 heme 鎖在蛋白質口袋裡
- 1 個保留給 O₂(或 CO、NO、H₂O)
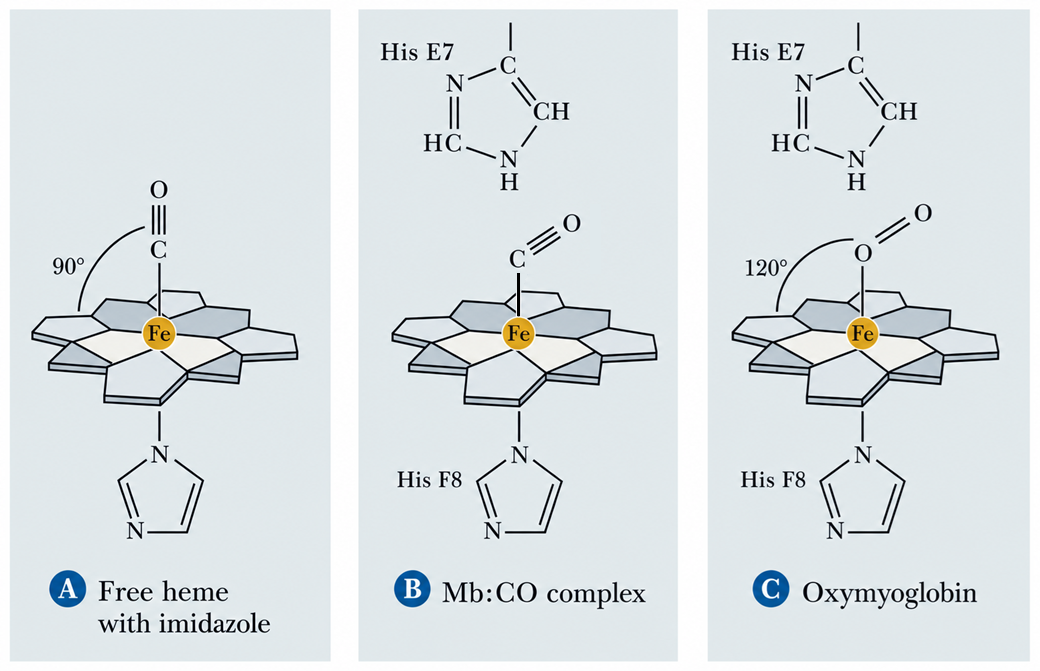
[A] 一氧化碳 CO 正常來說喜歡 180 度跟 Heme 結合
[B] Distal His E7 會伸進來卡位置,讓 CO 只能用歪角度接合 Heme
[C] Distal His E7 能跟 O2 形成強氫鍵,所以跟氧結合更穩
Distal histidine(E7 位置)並不直接配位 Fe,但它的側鏈伸進口袋裡,與結合上來的 O₂ 形成氫鍵,既穩定 O₂ 結合,也顯著降低 Fe²⁺ 自動氧化成 Fe³⁺ 的速率(完全阻止氧化並不可能,紅血球本身仍有微量自動氧化,需靠 methemoglobin reductase 持續還原回 Fe²⁺;Fe³⁺ 狀態即 methemoglobin,不能再載氧)。
His F8 (Proximal Histidine, 近端組胺酸):
- 位置:位於 F 螺旋的第 8 位。
- 作用:直接與 Heme 中心的離子形成共價鍵(配位鍵)。
- 結構變化:當氧氣結合時,鐵離子會移入卟啉環平面,進而拉動 His F8,引發整個蛋白質結構的構型轉變(T 態變為 R 態)。
His E7 (Distal Histidine, 遠端組胺酸):
- 位置:位於 E 螺旋的第 7 位,在 Heme 平面的另一側(相對於 His F8)。
- 作用:不直接與鐵離子結合,而是透過氫鍵穩定結合後的氧分子。
- 保護機制:它能強迫一氧化碳 (CO) 以傾斜的角度結合,降低 CO 與 Heme 的親和力,避免人體因內源性 CO 而中毒。
S 型曲線的背後:T state 與 R state
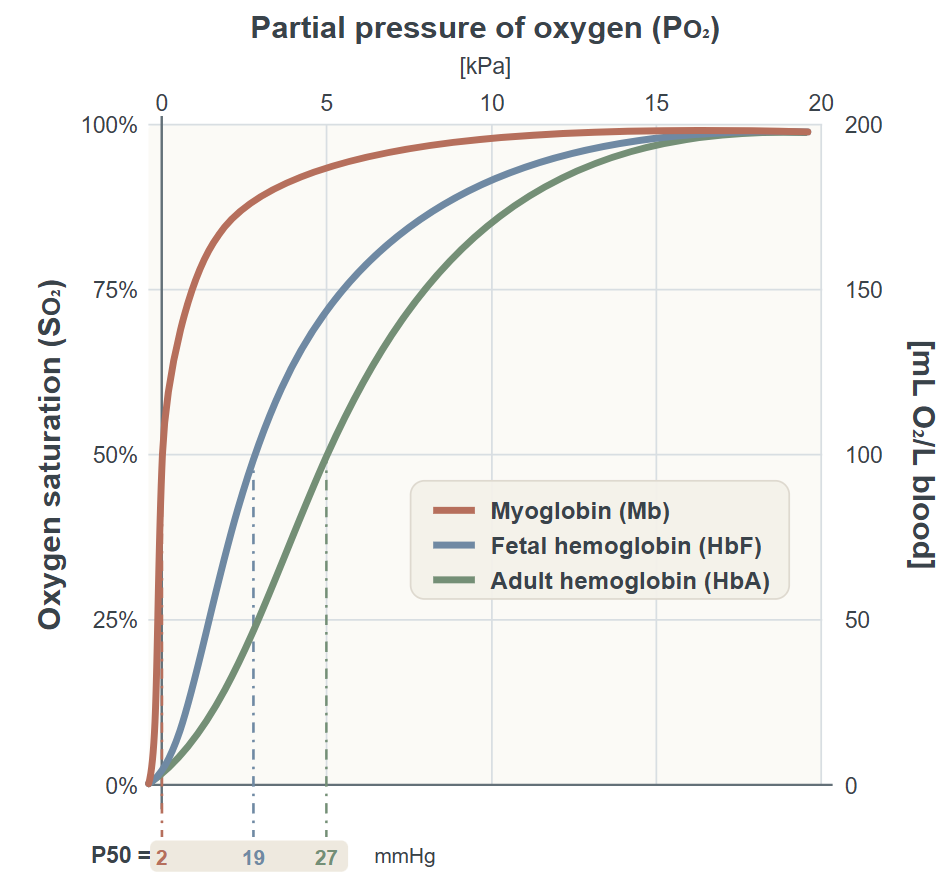
橫軸氧分壓,縱軸氧飽和度;Mb 是雙曲線,Hb 是 S 型曲線。
P50 是指當蛋白質達到 50% 氧飽和度時所需的氧分壓。
P50 越小 = 親和力越高(低氧氣濃度下就能飽和)。
P50 越大 = 親和力越低(高的氧氣濃度才能飽和,也代表更容易釋放氧氣)。
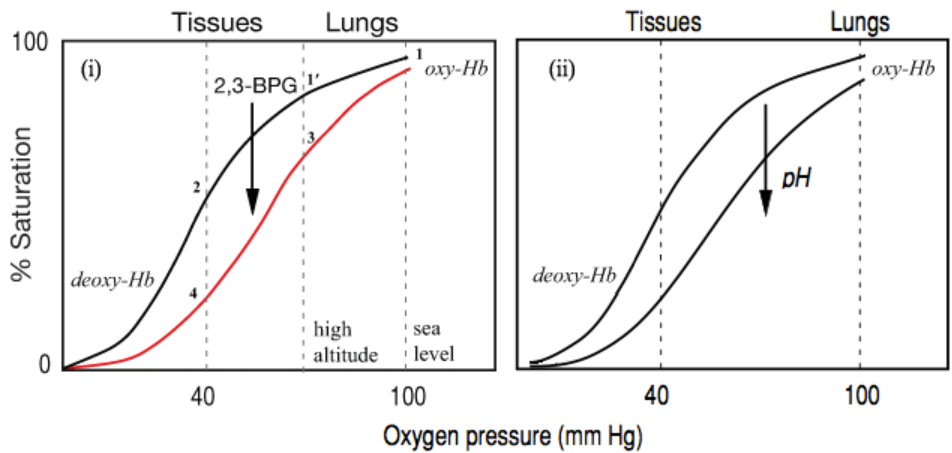
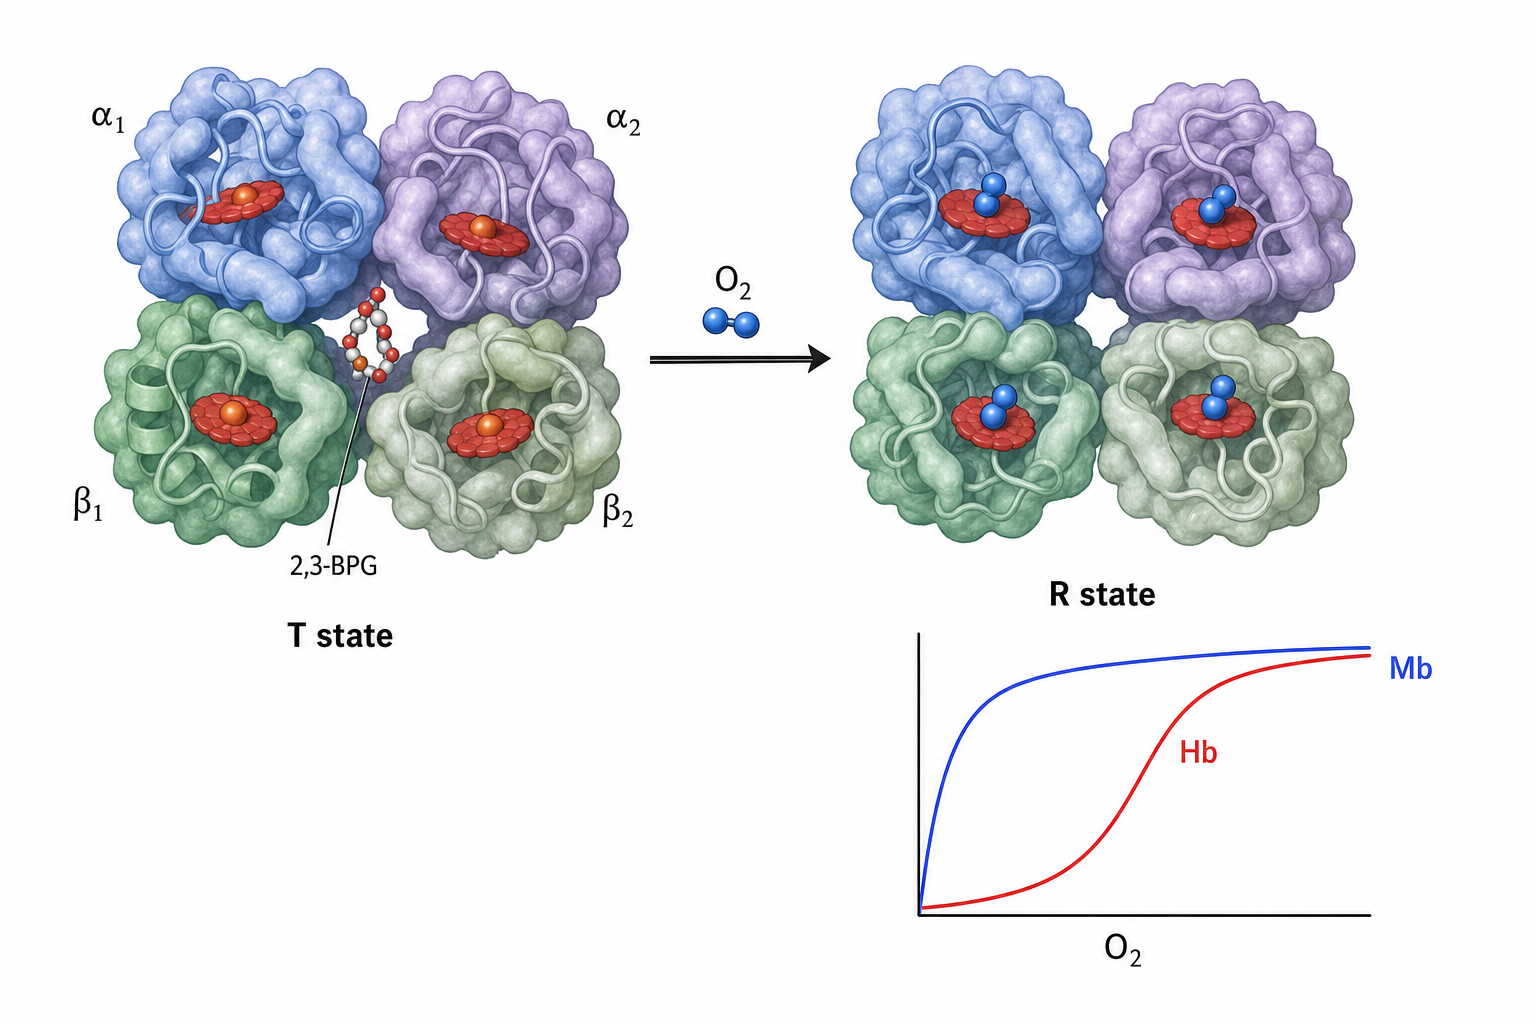
讀這張圖有三個步驟:第一,2,3-BPG 坐在去氧 Hb 的中央口袋,穩定低親和力的 T state。第二,O₂ 一旦開始結合 heme,Fe²⁺ 位移會透過 proximal His 牽動整個四聚體,讓 Hb 轉向 R state。第三,這種次單元彼此傳訊,才把 Hb 的氧結合曲線從 Mb 的雙曲線變成 S 型。
三種蛋白質的比較 根據圖中的數值,親和力由高到低依序為:Mb > HbF > HbA。
肌紅蛋白 (Mb) ,親和力最高:曲線呈「雙曲線」。它存在於肌肉中,平時緊抓氧氣,只有在肌肉極度缺氧時才會釋放,作為最後的氧氣儲備。
胎兒血紅蛋白 (HbF),親和力高於成人:曲線呈「S 型」。這讓胎兒能從母親的血液(HbA)中「搶走」氧氣,確保胎兒發育所需。
成人血紅蛋白 (HbA) ,親和力最低:曲線呈「S 型」。這種設計有利於在肺部(高氧)結合氧氣,並在組織(低氧)有效地釋放氧氣供身體使用。
Hb 的四個次單元會彼此溝通:
- T state(tense,緊縮態):低氧親和力,沒有 O₂ 結合時的主要形式。
- R state(relaxed,放鬆態):高氧親和力,結合 O₂ 後傾向的形式。
當第一個 O₂ 結合某個次單元時,該次單元的 Fe²⁺ 略微位移,帶動 proximal His,進而扯動整個蛋白質從 T 轉到 R。
R state 下,其他三個次單元結合 O₂ 變得容易,這就是協同結合(cooperativity),讓曲線呈 S 型。
S 型曲線讓 Hb 在肺(O₂ 分壓高)幾乎完全飽和,在組織(O₂ 分壓低)又能大量釋放,如果是雙曲線(像 Mb),在中間壓力釋氧的效率就差很多。
別位性(allostery)——同向 vs 異向
「別位(allosteric)」的原意是「在另一個位點」。配體不是結合在主位(active site)上,而是結合在另一個位點影響主位的活性。
舊譯「異位/變構」仍可見於文獻,本書統一用「別位」以呼應國教院與醫學系主流用語。
- 同向別位(homotropic):同一種配體之間的傳訊。O₂ 本身就是 Hb 的同向調節者。
- 異向別位(heterotropic):不同配體之間的傳訊。H⁺、CO₂、2,3-BPG 都是 Hb 的異向調節者。
2,3-BPG 的角色
紅血球在糖解過程中會產生大量 2,3-二磷酸甘油酸(2,3-bisphosphoglycerate, 2,3-BPG),它會結合進 T state 血紅素的中央口袋(β 鏈之間),把 Hb 鎖在 T state → 降低氧親和力 → 促進組織釋氧。
高海拔、慢性缺氧時,紅血球的 2,3-BPG ↑,氧解離曲線右移(同樣 O₂ 分壓釋出更多氧)。這是人體適應缺氧的重要機制。
發育中的血紅素:胚胎、胎兒、成人
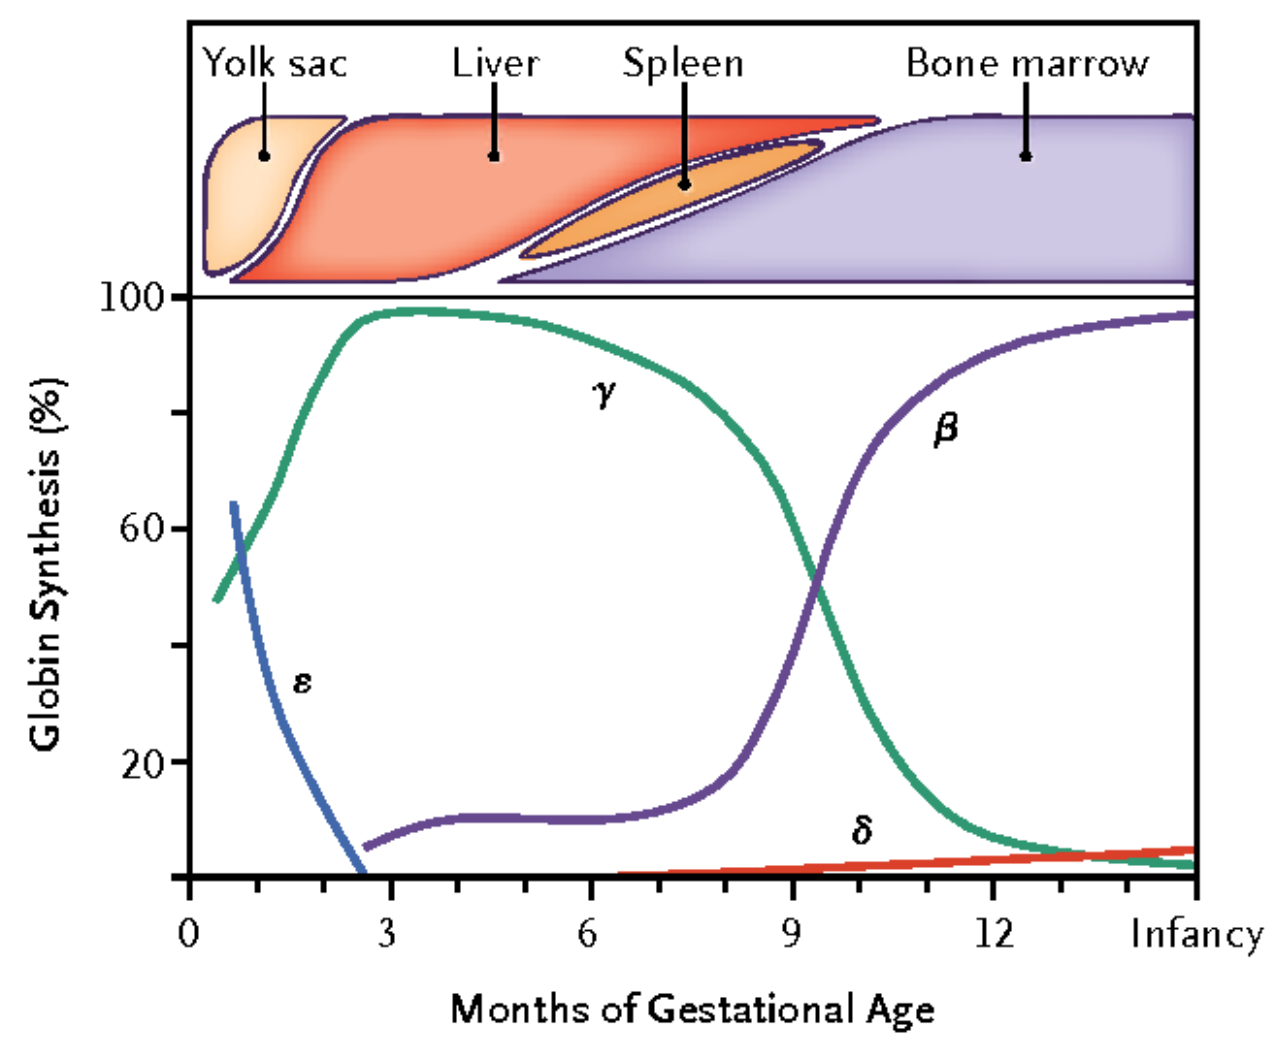
血紅素次單元在胚胎、胎兒、成人各階段的表現。
| 型態 | 組成 | 何時出現 | 氧親和力 |
| HbE(胚胎 embryonic) | ζ₂ε₂、α₂ε₂ 等 | 胚胎早期 | 很高 |
| HbF(胎兒 fetal) | α₂γ₂ | 妊娠中後期到出生後 6 個月 | 高於 HbA |
| HbA(成人主要) | α₂β₂ | 出生後取代 HbF | 受 2,3-BPG 強烈調節 |
| HbA₂(成人少量) | α₂δ₂ | 成人約占 2% | — |
為什麼胎兒 Hb 氧親和力比較高?
因為 γ 鏈的中央口袋結合 2,3-BPG 的能力差,所以 HbF 不太受 2,3-BPG 下調 → 曲線左移 → 親和力較高。這讓胎兒能從母體胎盤把氧「搶」過來。
鐮狀紅血球疾病(sickle-cell disease, HbS)
這是點突變導致疾病最經典的例子:
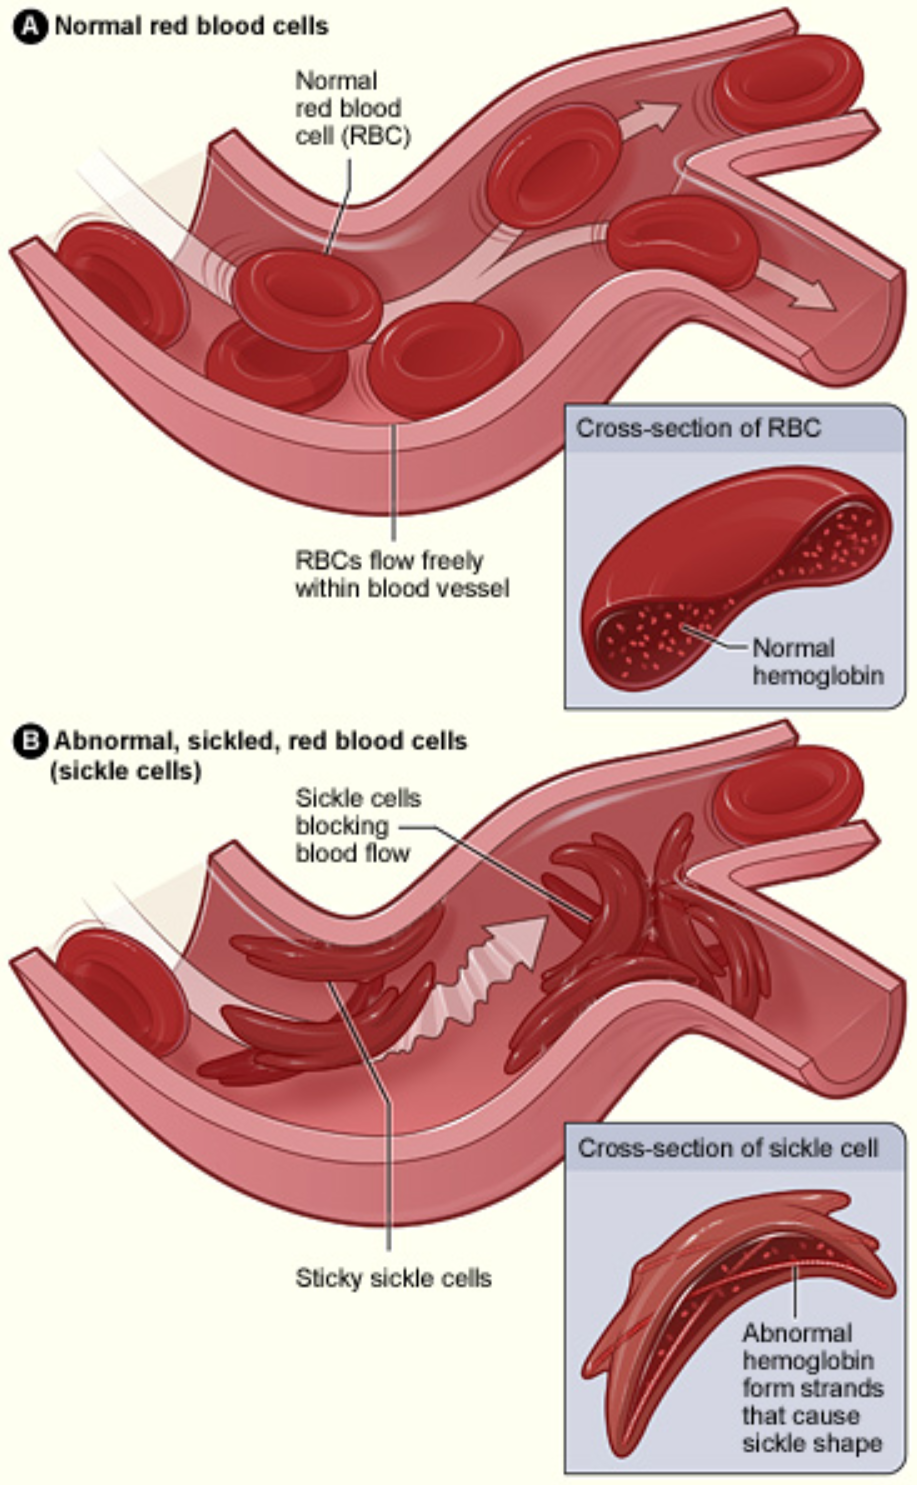
正常紅血球(圓盤型)與鐮狀紅血球的對比。
- 基因:β-globin 基因第 6 個密碼子(codon 6)GAG → GTG
- 蛋白:β 鏈第 6 個胺基酸 Glu → Val(帶負電親水 → 疏水)
- 機制:去氧態時,突變出來的 Val 暴露在分子表面,成為「疏水黏點」。許多 HbS 分子的疏水斑塊彼此「像油滴一樣聚合」,形成長纖維,把紅血球拉成鐮刀狀。氧合時聚合減少、紅血球可暫時恢復正常,但反覆變形會讓紅血球壽命縮短、阻塞微血管。
- 症狀:慢性溶血性貧血、血管阻塞危象、脾功能失去、感染易感等。
重點是「疏水作用」:是水的熵把突變的 Val 推到一起。
Heme 的分解:血紅素氧化酶 Heme oxygenase
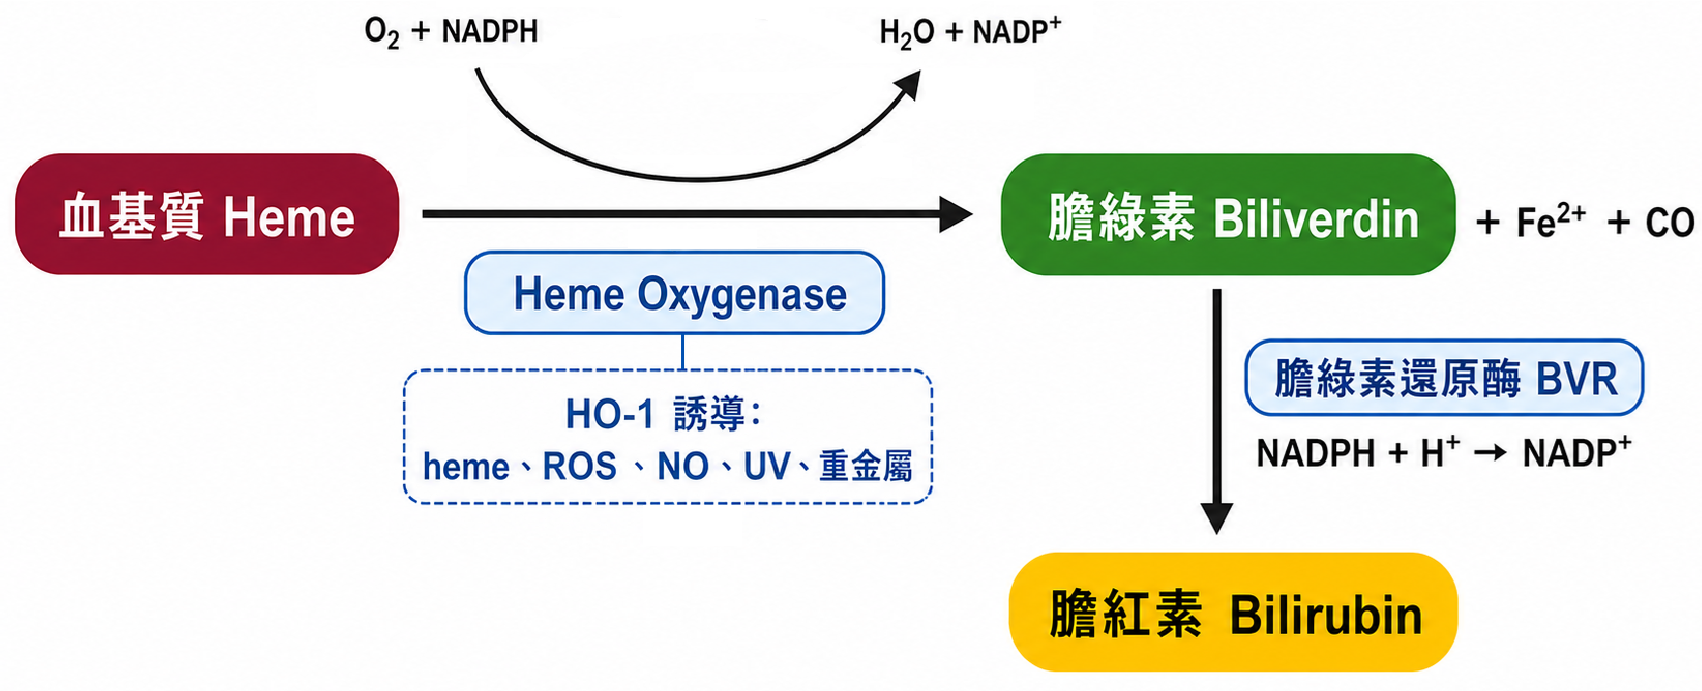
紅血球壽命約 120 天,老化後在脾臟被巨噬細胞吞食,heme 被分解:
膽紅素會被肝臟接管、結合葡萄醣醛酸後排入膽汁。
這也是人體內生性 CO 的主要來源(CO 在低劑量下是訊號分子)。
高膽紅素血症會表現為黃疸。
- 108-2-醫學一 Q87 下列何種醣類代謝產物會影響氧分子與血紅蛋白(hemoglobin)的親和力?…
- 109-2-醫學一 Q75 配體(Ligand)與蛋白質之同向異位性作用(homotropic allost…
- 112-2-醫學一 Q74 母體血液中的氧可以輸送給胎兒,是因為胎兒的血紅蛋白(hemoglobin)對氧氣…