蛋白質結構從一條序列長到一個功能性分子,會經過四個層級。
先把四層結構放在同一張圖讀:
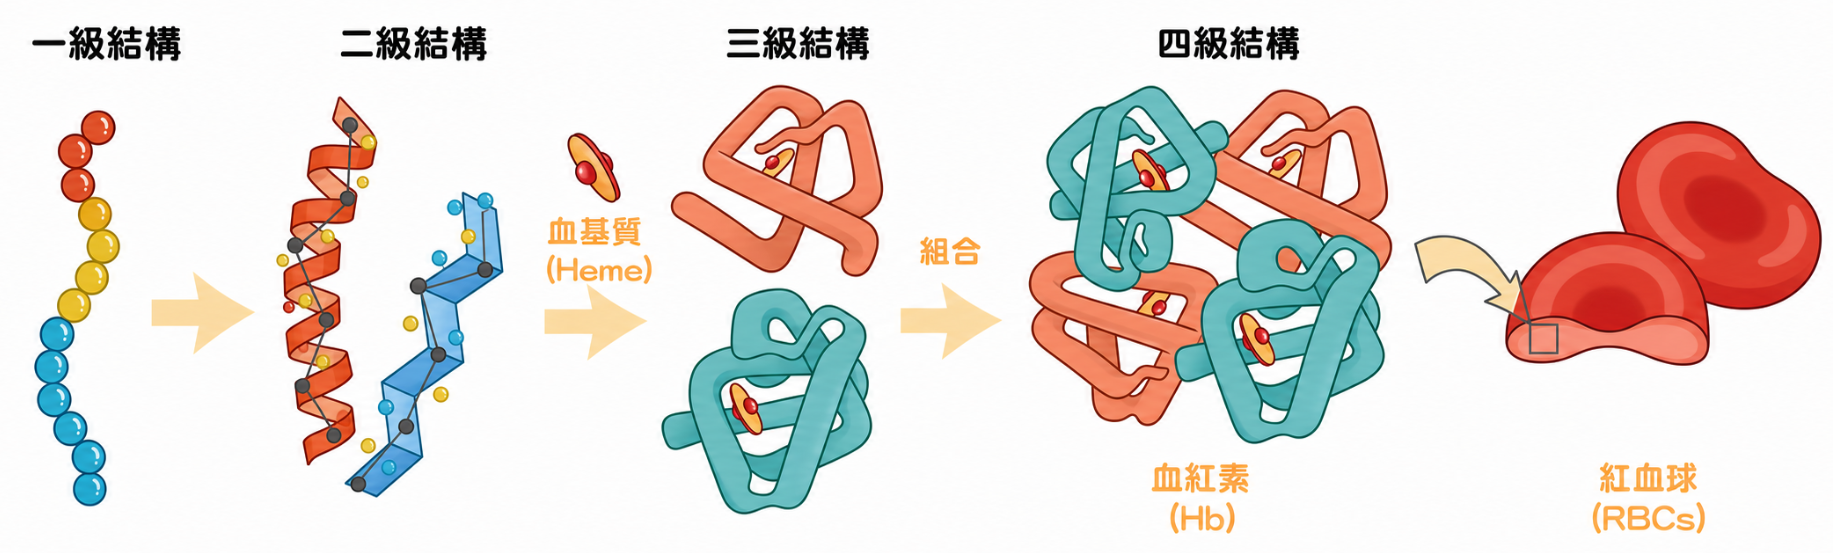
蛋白質從 primary sequence 進入 secondary motifs,再折成 tertiary structure,最後由多條次單元組成 quaternary complex
讀圖時先抓一個核心:一級是序列,二級是局部規則,三級是單條鏈的完整 3D,四級才是多條鏈的組裝。考題若問「哪一層由次單元組成」,不要被 α-helix 或 β-sheet 迷惑,答案是四級結構。
統整表
| 層級 | 定義 | 穩定它的主要力 | 決定者 |
| 一級 Primary | 胺基酸序列 | 肽鍵(共價) | 基因 |
| 二級 Secondary | 局部規則摺疊 α-helix、β-sheet、turn | 主幹氫鍵 | 序列上各胺基酸的偏好 |
| 三級 Tertiary | 整條多肽鏈的 3D 摺疊 | 疏水核心 離子鍵 氫鍵 雙硫鍵 | 一級序列 (Anfinsen 實驗證實) |
| 四級 Quaternary | 多條多肽鏈組成的複合體 | 次單元間的非共價與共價接觸 | 細胞內次單元的可用量 |
二級結構(一):α-Helix
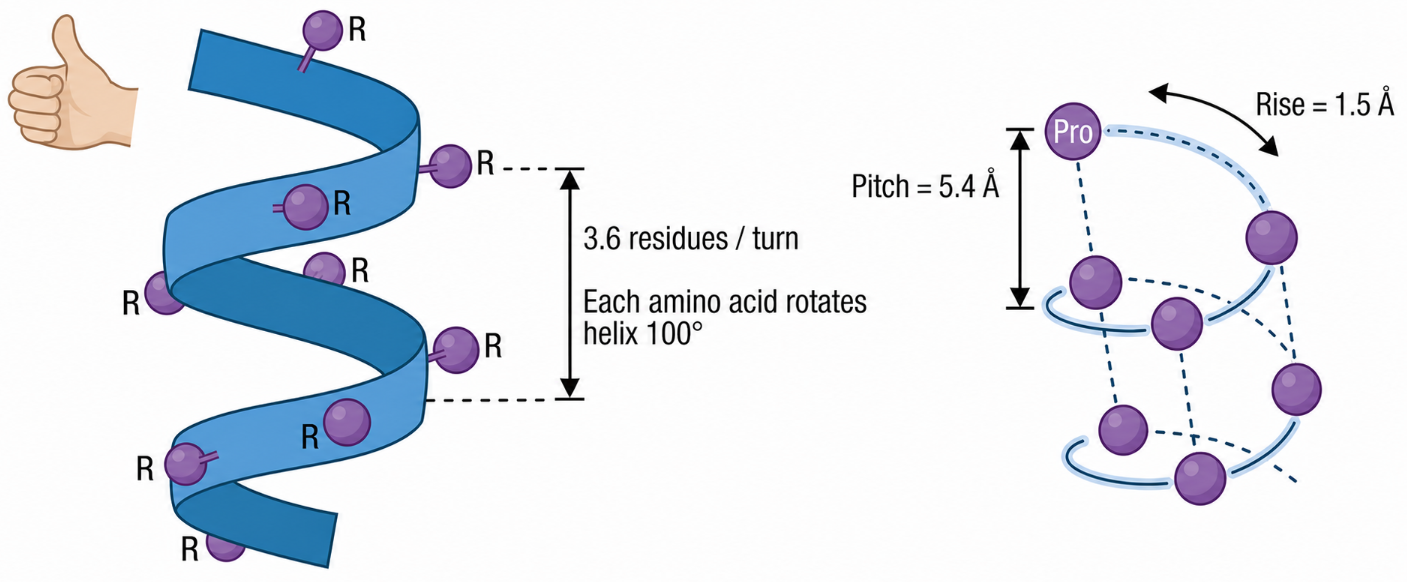
α-helix 是最常見的二級結構。想像拿一根直的肽鏈,把它像彈簧一樣繞起來:
α-helix 的關鍵特徵:
- 右手螺旋:大自然絕大多數蛋白質用右手螺旋。左手是極少數罕見情況。
- 每圈 3.6 個胺基酸、螺距 5.4 Å、每個胺基酸往上推 1.5 Å。
- 氫鍵規律:第 n 個胺基酸主幹上的 C=O 與第 n+4 個的 N-H 形成氫鍵。所有氫鍵方向一致、平行於螺旋軸。
- 穩定它的是主幹骨架的氫鍵,不是側鏈之間的作用力!
- 電偶極效應:因為所有氫鍵方向相同,整個螺旋形成一個累積偶極:N 端帶部分正電、C 端帶部分負電。這就是為什麼 α-helix 的 N 端常用來結合帶負電的配體(例如磷酸基)。
- Pro、Gly 是螺旋的破壞者:Pro 的環狀結構折彎骨架、Gly 太靈活而熵過高,都不適合待在螺旋裡。所以 α-helix 中很少出現 Pro 和 Gly;它們常出現在螺旋的起點或終點,當「破局者」。
把一段 α-helix 想像成一隻毛毛蟲的絨毛外衣:骨架是內部結實的彈簧(靠氫鍵),R group(側鏈)往外伸展,決定這段螺旋的「外表個性」。
二級結構(二):β-Sheet
β-sheet(又叫 β-摺板)是另一種常見二級結構。它不像 α-helix 那樣自己繞自己,而是讓多條伸展的肽鏈並排,鏈與鏈之間用氫鍵連起來,形成一片像摺扇的構造。
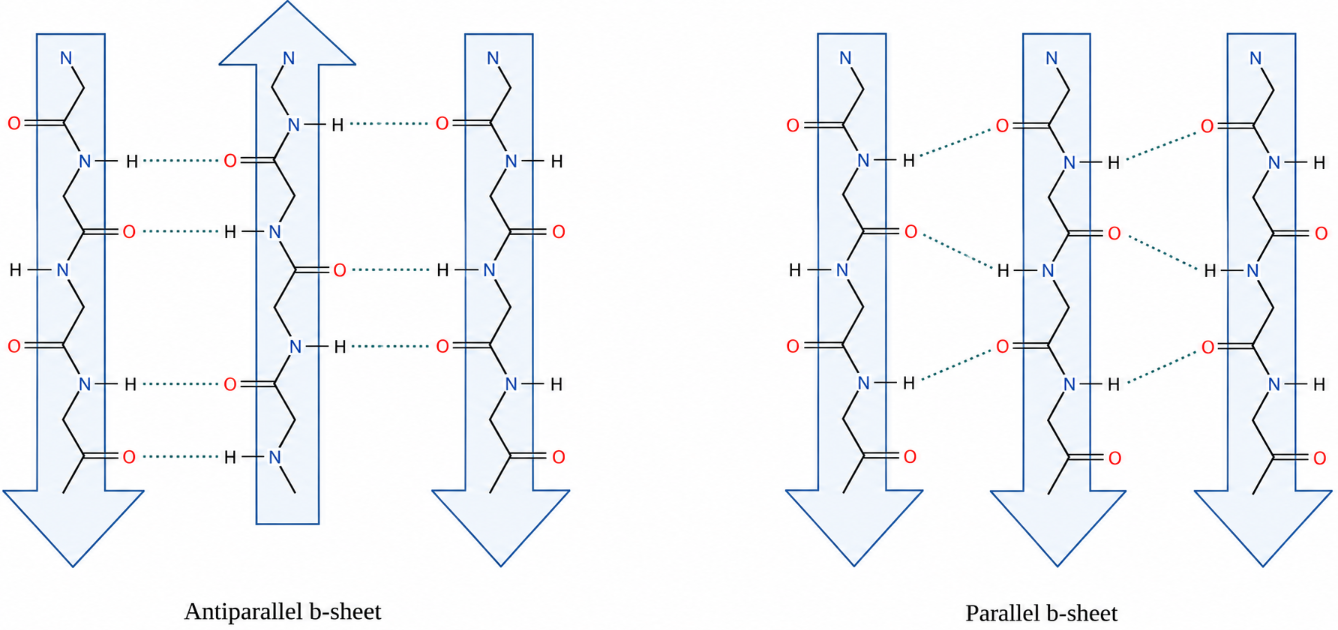
β-sheet 有兩種方向組合:
- 反平行(antiparallel):相鄰兩條鏈方向相反(N→C 與 C→N)。氫鍵垂直於鏈軸、幾何最佳,較穩定。
- 平行(parallel):相鄰兩條鏈方向相同。氫鍵略微傾斜,稍微不穩定。
- 同一個蛋白質中兩種方向可以混合出現。
轉角(turn)與亂組(loop)
蛋白質不可能一直走直線,它需要轉彎。「β-turn」是由 4 個胺基酸組成的緊湊 180° 掉頭,常出現在 β-sheet 的兩端;「亂組」則是連接不同二級結構的「自由段」,看似無規則,但常常是功能位點(酵素活性中心、抗體結合 loop)。
三級結構:蛋白質的真實長相
把二級結構元件塞進真正的 3D 空間,讓疏水側鏈縮進內部、親水側鏈露在表面,就是三級結構。
三級結構的穩定主要靠:
- 疏水核心(最強驅動力)
- 氫鍵(除了主幹外,R group 之間也可以)
- 離子鍵(鹽橋)
- 雙硫鍵(唯一的共價鍵,常見於分泌蛋白)
如果題目問你「三級結構中最常見的共價交互作用是什麼?」,答案是雙硫鍵(其他都是非共價)。
但如果問你「最多的交互作用是什麼?」,是氫鍵和疏水作用。
三級結構中常見「domain(結構域)」概念:一條多肽鏈可以分成好幾個相對獨立的折疊單元,每個 domain 負責一項功能。
例如激酶的「激酶 domain + 調節 domain」、抗體的「V domain + C domain」。
四級結構:團隊合作
很多蛋白質需要多條多肽鏈組合才能發揮功能。血紅素就是經典:α₂β₂ 四聚體(2 個 α 鏈 + 2 個 β 鏈)。四級結構讓蛋白質可以:
- 協同作用(一個次單元的構形改變會傳給另一個,這是血紅素的氧親和力為什麼是 S 型曲線的原因)
- 多個活性中心合作(像接力賽)
- 調節方便(改變一個次單元就能影響整體)
同一個蛋白質可能存在多種四級結構。例如血紅素在氧飽和度不同時會在 T state(低親和)和 R state(高親和)之間切換,這實際上就是兩個不同的四級結構構型。
固有無序蛋白(Intrinsically Disordered Proteins, IDP)
並非所有蛋白質都有固定 3D 結構。人類蛋白質中相當比例含有顯著的無序區段(intrinsically disordered regions, IDR):這些區段在生理條件下沒有固定的三維摺疊,但仍然有功能。整條蛋白幾乎全部無序的稱為「完全 IDP」,只在局部有無序段的則稱為「含 IDR 的蛋白」。
IDP 的特色:
- IDPs 沒有固定的二級或三級結構,它們在不同構型間快速轉換。
- 胺基酸序列富含極性、帶電胺基酸(Pro、Gly、Glu、Lys),少芳香族
- 因其形狀多變,IDP 能夠與多種分子結合,每遇到一個就折疊成不同形狀(coupled folding and binding),功能常是訊號樞紐。
- 例子:p53 的轉錄活化區、α-synuclein(帕金森氏症)、tau 蛋白(阿茲海默症)
IDP 推翻了「序列 → 結構 → 功能」的教條,原來「沒有結構」本身也可以是一種功能設計。
- 113-1-醫學一 Q75 下列何者為穩定蛋白質$\alpha$-螺旋結構的主要因素?…
- 114-1-醫學一 Q75 蛋白質主鏈上有兩個可以轉動的二面角(phi ( Φ ) and psi( Ψ )…
- 108-2-醫學一 Q74 下列有關蛋白質結構的敘述,何者正確?…