阿豹正在努力修編本節,製作更好的教材,未來內容可能稍有變更。
DNA 每天受各種損傷:去胺化、氧化、烷化、UV(TT dimer)、DNA 複製錯誤、雙股斷裂。人類主要 5 種修復機制:
8.6.1 直接修復(Direct repair)
- 光裂合酶(DNA photolyase):直接打開 UV 造成的嘧啶二聚體(TT dimer、CT dimer);需 光 + FADH⁻ 作輔因子。
- O⁶-methylguanine methyltransferase(MGMT):直接把烷基從 guanine 上抓走,自身不可逆失活(烷基轉移至活性位 Cys,為自殺性酵素 suicide enzyme;細胞需重新合成才能再次修復)。
- 在哺乳動物,photolyase 大多失效(因此 UV 傷害主要走 NER)。
國考:DNA photolyase 修復 pyrimidine dimer 需 FADH⁻(還原型 FAD)作 cofactor。
8.6.2 鹼基切除修復(Base Excision Repair, BER)
BER 流程:DNA glycosylase → AP endonuclease → polymerase 補入 → ligase 接合。

適用情境:單一鹼基化學損傷
- Cytosine 去胺化 → Uracil(最常見)
- 氧化(8-oxo-G)
- 烷基化
- 去鹼基(abasic site)
步驟(依序):
- DNA glycosylase 切斷 N-glycosidic bond,移除受損鹼基 → 形成 AP site(apurinic/apyrimidinic) ← 第一個作用酶
- AP endonuclease 切斷 AP site 的磷酸二酯鍵
- DNA polymerase(pol I 原核、pol β 真核) 補入正確核苷酸
- DNA ligase 接合
國考超高頻:
• 「移除 uracil(去胺化)靠哪條修復?」答案 BER
• 「BER 第一個作用酶?」答案 DNA glycosylase
8.6.3 核苷酸切除修復(Nucleotide Excision Repair, NER)
NER 流程(GG-NER 與 TC-NER):辨識扭曲病變 → 解旋 → 雙切口切除 12–30 nt 片段 → 補填 → 接合。

適用情境:引起 DNA 結構扭曲的大型損傷:尤其 UV 造成的 TT dimer / 6,4-photoproduct、大型加合物(benzo[a]pyrene)。
順鉑造成的 DNA 損傷:順鉑(cisplatin)主要在同一股 DNA 的嘌呤鹼基間形成大型鉑-DNA 加合物,造成雙股螺旋彎曲,並阻礙 DNA 複製與轉錄。這類扭曲螺旋的股內病灶主要由 NER 切除;腫瘤細胞若提高 NER 能力,可能增加順鉑抗藥性。
少量順鉑病灶會形成 DNA 股間交聯(interstrand crosslink, ICL)。ICL 把兩股 DNA 鎖在一起,不能由典型 NER 單獨完成修復,而需 Fanconi anemia/BRCA 路徑協調核酸酶切開病灶,再由跨損傷合成(TLS)與同源重組(HR)接續處理。
國考判讀:題目若把順鉑描述為造成大型、扭曲 DNA 螺旋的加合物,主要修復路徑是 NER;若明確問股間交聯的完整修復,則不能只答 NER。
原核關鍵酵素:UvrABC excinuclease(UvrA₂B 偵測 + UvrC 切 + UvrD helicase 移除 12 nt 片段 + pol I 補 + ligase 接合)。
真核:XP 蛋白群(XPA–XPG),先辨識、TFIIH 解旋、XPG 與 XPF-ERCC1 做 5' 和 3' 雙切口,切下 24–32 nt。
臨床:NER 缺陷 → 著色性乾皮症(Xeroderma pigmentosum, XP),極度易因曝曬產生皮膚癌。
國考:UvrABC = NER(非 MMR 非 BER!)
8.6.4 錯配修復(Mismatch Repair, MMR)
錯配修復機制:偵測剛複製後的錯配、以甲基化辨識模板股、切除含錯誤的新生股、重新合成補齊。
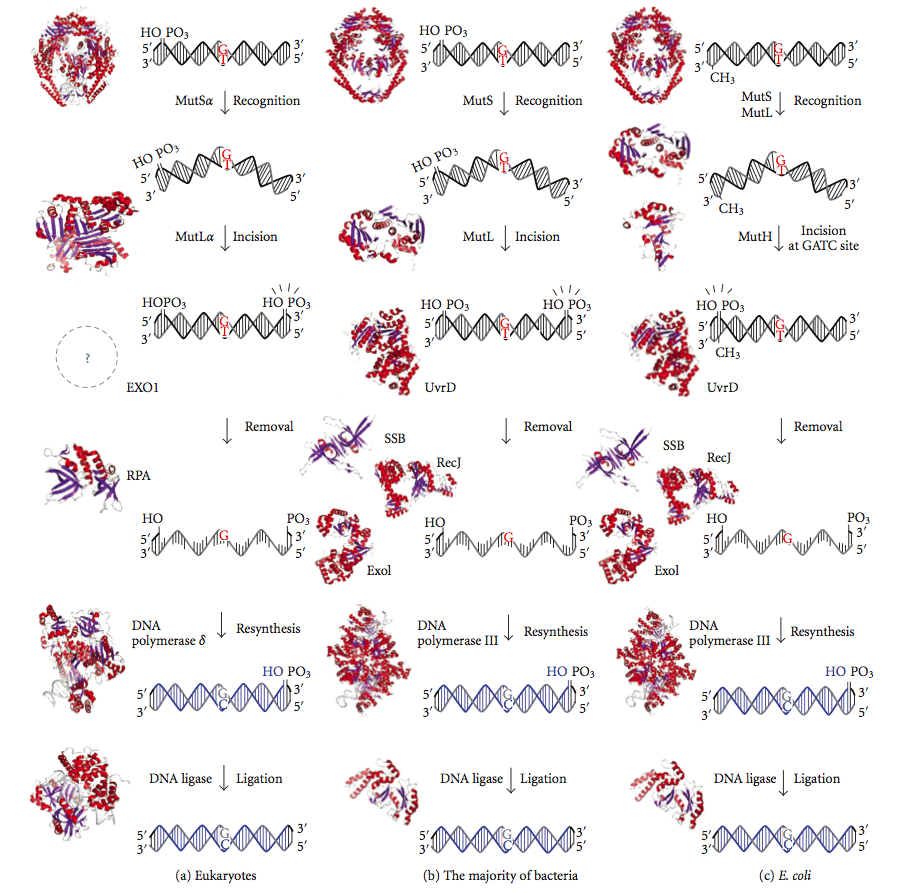
適用情境:DNA 複製過程中逃過 proofreading 的鹼基錯配與小插入/缺失環(indel loop)。
原核 E. coli 機制(methyl-directed):
- MutS 辨識錯配 → MutL 招募 → MutH 切口
- 用 Dam methylation(GATC 上的 adenine)做「模板 vs 新股」辨識:母股已甲基化、新股尚未甲基化 → 切除未甲基化的新股
- Helicase II(UvrD) 解旋、exonuclease 移除錯誤片段
- Pol III(注意:MMR 例外用 pol III,不是 pol I)+ ligase 補齊
真核對應:MSH2/MSH6(= MutSα)、MLH1/PMS2、RFC、PCNA、pol δ/ε。
臨床:MMR 缺陷(MSH2、MLH1 突變)→ 遺傳性非息肉性大腸直腸癌(HNPCC / Lynch syndrome)。
國考重點:
• MMR 依據 甲基化(methylation)判斷模板股。
• Dam methylase 甲基化的是 GATC 上的腺嘌呤,作為 MMR 模板辨識標記。
• 不參與 MMR 的是 DNA glycosylase(那是 BER);MMR 需要的是 pol III、ligase、helicase II、MutS/L/H。
8.6.5 重組修復 / 同源重組(HR)與 NHEJ
雙股斷裂(DSB) 修復:
- Homologous recombination(HR):以姊妹染色體為模板,高保真。關鍵蛋白:
- MRN complex(MRE11–RAD50–NBS1):辨識 DSB
- BRCA1 / BRCA2:招募
- RAD51:DNA strand invasion(類似 E. coli RecA)
- Non-homologous end joining(NHEJ):直接接合(可能產生缺失),由 Ku70/80、DNA-PKcs、ligase IV 參與。
V(D)J 重組(抗體、T 細胞受體基因重組)用到 RAG1/RAG2:這是特化的 DNA 重組,不屬於 HR 的修復範疇。
國考陷阱:「哺乳動物 HR 不需要什麼?」答案 RAG1/2(那是 V(D)J 抗體重組)。正確參與 HR 的是 BRCA1、MRN、RAD51。
8.6.6 SOS 修復(原核特有)
- DNA 嚴重損傷時,細菌啟動 SOS response:
- LexA repressor 被 RecA-ssDNA 啟動的自體蛋白酶活性切斷 → 解除 SOS 基因抑制。
- 表達的 SOS 基因群包括:
- DinB(= pol IV) 與 UmuDC(= pol V),兩個低保真度 translesion synthesis(TLS)聚合酶。
- 額外的 RecA、UvrA/B/D(NER 加強)、SulA(細胞分裂暫停)等。
- Pol IV、Pol V 為 TLS 聚合酶:可越過受損鹼基繼續合成(沒有 proofreading 活性)→ 容許不精確的修復以保住生存 → 高突變率(mutator phenotype),這是抗生素誘發細菌突變、產生抗藥性的重要機轉。
- 真核也有 TLS 系統(pol η、pol κ、pol ζ 等 Y-family),原理類似。
8.6.7 五大修復機制總表
| 機制 | 處理的損傷 | 第一個辨識/切除酶 | 補鏈聚合酶 |
| Direct repair | UV TT dimer、O6-烷化 G | Photolyase / MGMT | 無(直接復原) |
| BER | 單鹼基化學損傷(U、8-oxoG) | DNA glycosylase | Pol I(原核)/ Pol β |
| NER | UV 損傷、大加合物(結構扭曲) | UvrABC / XPA-XPG | Pol I / Pol δ |
| MMR | 複製後錯配、小 indel | MutS(辨識) + Dam methyl | Pol III |
| HR / NHEJ | 雙股斷裂 | MRN、BRCA1、RAD51 | Pol δ/ε |
- 110-2-醫學一 Q83 UvrABC 核酸內切酶(UvrABC excinuclease)參與下列何種 …
- 113-1-醫學一 Q81 鹼基切除修復(base excision repair)過程中,催化修復作用的第…
- 114-2-醫學一 Q82 在錯誤配對修復(mismatch repair)過程中,大腸桿菌是利用何種機制來…