鑰匙與鎖(lock-and-key)vs. 誘導契合(induced fit)
早期的 Fischer 提出鑰匙與鎖模型:酵素的活性中心(active site)形狀固定,只有「形狀剛好」的受質才能嵌進去。這個模型解釋了酵素的立體專一性(stereospecificity):為什麼 D-glucose 和 L-glucose 明明是鏡像異構物,酵素只認得其中一個。
但後來發現事情沒那麼單純。
Koshland 提出誘導契合(induced fit)模型:活性中心原本不是剛好的形狀,受質接近時,酵素會主動變形去包住受質,形成一個更緊密的結合。教科書最愛舉的例子是己醣激酶(hexokinase),它在和葡萄糖結合前是開放的,結合後會合起來。
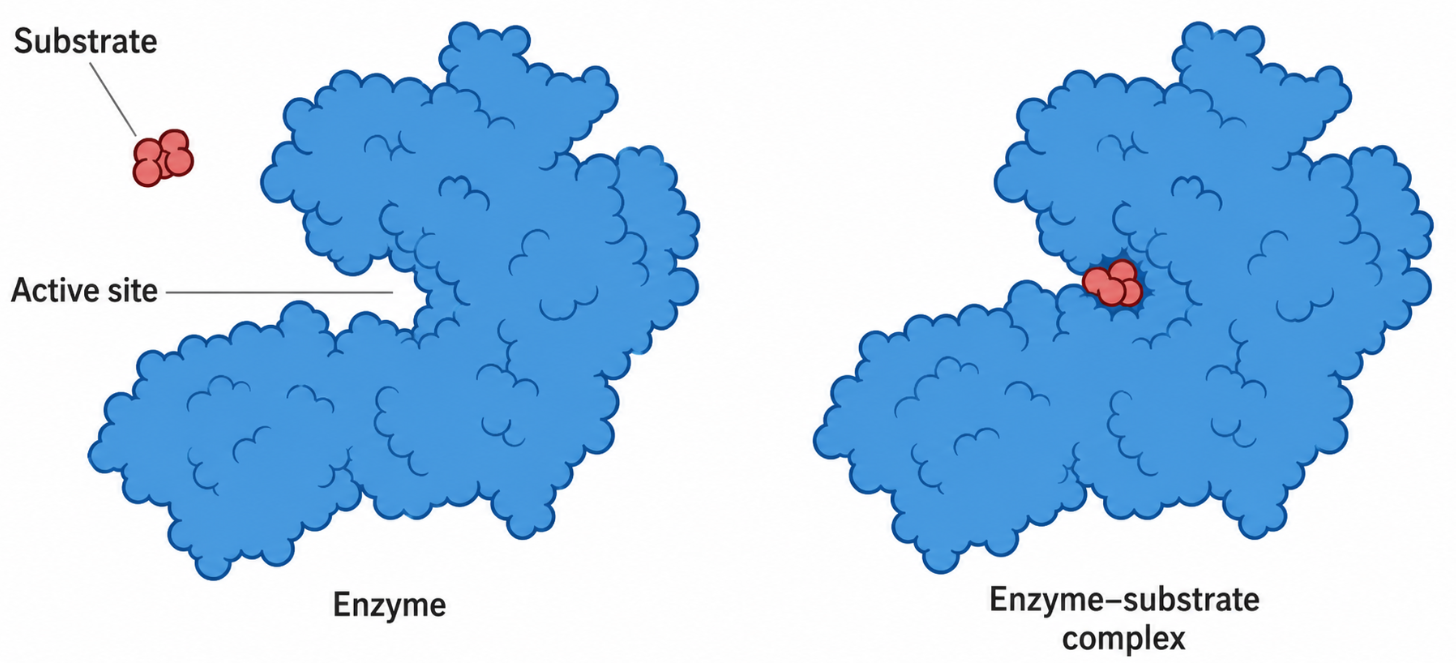
左邊是沒有受質時的酵素(張開的嘴),右邊是葡萄糖(紅色小分子)結合後酵素合起來把它包住。這種合起來有兩個好處:
- 排除水分子:反應在「乾燥」的環境中進行,提高催化效率
- 精準定位:避免非特異受質(例如水分子)誤被當作受質,把磷酸化的 ATP 浪費掉
酵素「結合過渡態」比結合受質更緊
Linus Pauling 最早提出一個觀念:酵素催化的本質不是「結合受質」,而是「結合過渡態」比結合受質更緊。
想像酵素的活性中心形狀不是「受質本體的形狀」(Key and lock),而是「受質扭曲到即將變成產物時的那個瞬間形狀」。
當 S 變形成 TS 時,酵素特別配合它:這個多出來的結合能,正好補償了 S 要翻過活化能山所需的能量。
這個觀念有實際應用:過渡態類似物(transition state analogs)常常是超強的酵素抑制劑,因為它長得像活化能山頂那個瞬間,讓酵素死抓著它不放。很多藥物(例如一些 HIV 蛋白酶抑制劑)就是這麼設計出來的。
立體專一性(stereospecificity)
酵素的活性中心是由 L-胺基酸組成的,本身就是手性(chiral)的。
因此它對受質的立體結構非常敏感,甚至可以分辨表面上看起來對稱的分子上,哪一個面才能被修飾。
最經典的例子是 TCA 循環裡的檸檬酸(citrate):它看起來左右對稱,但 aconitase 永遠只脫掉原本從草醯乙酸 OAA 那端來的那個 OH,這叫前手性(prochirality),我們會在第四章再看到。